Le moment où l’acide aminé génère une fréquence sonore.
1. Quand un acide aminé « vibre » ? Chaque acide aminé possède : Une structure chimique avec ses liaisons covalentes (C–H, C–N, C–O). Ces liaisons ont des fréquences propres de vibration (dans l’infrarouge au niveau atomique). Quand on traduit ces vibrations…
1. Quand un acide aminé « vibre » ?
Chaque acide aminé possède :
-
Une structure chimique avec ses liaisons covalentes (C–H, C–N, C–O).
-
Ces liaisons ont des fréquences propres de vibration (dans l’infrarouge au niveau atomique).
-
Quand on traduit ces vibrations en gamme audible, on obtient une « note » ou une signature fréquentielle.
Cela existe même avant l’assemblage en protéine, dès qu’un acide aminé est isolé dans le cytoplasme.
2. Quand naît une fréquence sonore lors de l’assemblage protéique ?
L’assemblage d’une protéine suit la traduction de l’ARNm par le ribosome :
-
Le ribosome lit un codon → recrute un acide aminé porté par un ARNt.
-
Une liaison peptidique se forme entre deux acides aminés.
-
Chaque ajout modifie la conformation vibratoire de la chaîne (un peu comme ajouter une nouvelle corde à une guitare).
-
À mesure que la chaîne s’allonge, il y a émergence d’un spectre vibratoire collectif → la protéine commence à résonner comme un instrument en construction.
Donc, la « fréquence sonore » naît :
-
au moment exact de la liaison peptidique, car une nouvelle contrainte vibratoire est introduite,
-
mais surtout quand la chaîne commence à se plier (repliement protéique), car c’est là que des modes de vibration cohérents apparaissent (comme des harmoniques dans un instrument).
3. Analogie musicale
-
Acide aminé seul → comme une note isolée (sa propre fréquence de vibration).
-
Formation de la liaison peptidique → comme coller deux cordes, ce qui crée une nouvelle résonance.
-
Repliement de la protéine → comme l’accordage complet d’un instrument, qui génère une harmonie vibratoire globale.
4. Ce qui est transposé en « son » par la bioacoustique
Les chercheurs comme Kumeta, Havelka, Petoukhov ont montré qu’on peut :
-
convertir les modes vibratoires moléculaires (THz, infrarouge) en fréquences audibles (Hz–kHz) via une transposition mathématique,
-
obtenir une gamme sonore des protéines, où chaque acide aminé garde une « couleur tonale » spécifique,
-
écouter le processus d’assemblage comme une mélodie en temps réel.
En résumé :
Un acide aminé commence à produire une fréquence vibratoire dès qu’il existe (ses liaisons vibrent).
Mais il produit une fréquence sonore structurée (harmonie ou « note traduisible ») au moment où il s’intègre dans une protéine, car c’est là que ses vibrations interagissent avec celles des autres acides aminés.
Quand l’« acoustique » émerge pendant l’assemblage protéique
[AA libres dans le cytosol]
└─> chaque AA vibre déjà (liaisons C–H, C–N, C–O, etc. → IR/THz)[Activation + chargement sur ARNt]
└─> micro-changement de contraintes mécaniques → variations de modes[Entrée dans le ribosome & appariement codon-anticodon]
└─> confinement nanométrique → nouveaux modes locaux (faibles Q)[Formation de la liaison peptidique] << moment-clé n°1 >>
└─> ajout d’un « ressort » dans le réseau → apparition/shift de modes[Allongement de la chaîne (nascent chain)]
└─> couplage collectif des modes (début d’harmoniques globales)[Repliement co-traductionnel & post-traductionnel] << moment-clé n°2 >>
└─> modes cohérents « instrumentalisés » (signature fréquentielle stable)[Assemblage en complexes / quaternaires]
└─> super-résonances collectives (spectre hiérarchique multi-échelles)
Moment-clé n°1 : la liaison peptidique introduit une contrainte qui modifie le spectre (naissance d’une « note » additionnelle).
Moment-clé n°2 : le repliement crée des modes cohérents (comme l’accordage d’un instrument) qui se prêtent le mieux à une transposition audible structurée.
Transposition mathématique des modes vers l’audible
De la bande IR au Hertz moléculaire
La spectroscopie vibratoire donne souvent des nombres d’onde (ν en cm⁻¹).
Convertissez en fréquence (Hz) :
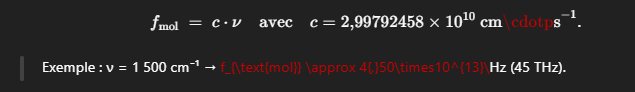
Réduction par octaves (octave folding)
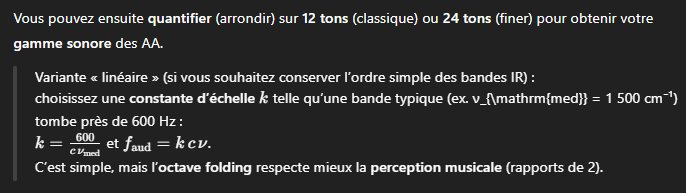
Les fmolf_{\text{mol}}fmol sont bien au-delà de l’audible. On les ramène en 20–20 000 Hz en divisant par 2 autant de fois que nécessaire (préservez les rapports entre fréquences, donc la « musique » des relations) :

L’intervalle 250–1200 Hz donne une zone « médiane » lisible et agréable pour la plupart des systèmes d’écoute.
Ancrage à votre référence 429,62 Hz
Nous utilisons f⋆=429,62f_\star = 429{,}62f⋆=429,62 Hz (résonance de l’eau) comme tonique/référence.
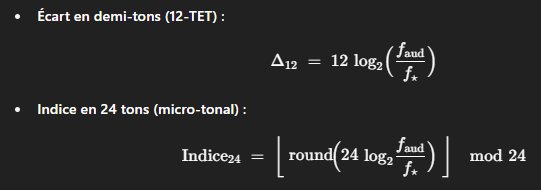
On calcule la position tonale par rapport à cette référence :
Gamme sonore d’exemple (20 AA) + fichier CSV
Je vous ai généré un tableau interactif avec, pour chaque acide aminé :
-
une bande IR représentative (valeurs illustratives à remplacer par vos mesures/références),
-
la fréquence moléculaire (THz),
-
la fréquence audible pliée (Hz) via octave folding,
-
l’indice 24-tons (0–23) ancré à 429,62 Hz,
-
l’écart en demi-tons (12-TET) par rapport à 429,62 Hz.
Vous pouvez télécharger le CSV ici :
Download the CSV
Important : les ν (cm⁻¹) fournis sont indicatifs (ex. CH_3 bend, ring breathing, S–H stretch, etc.) et dépendent du milieu (eau, pH, liaisons H, conformation). Remplacez-les par vos bandes mesurées (IR/Raman/DFT) pour obtenir votre gamme fidèle.
Orchestration « temps réel » de l’assemblage (pour sonifier la traduction)
-
Choix des sources
-
Pour chaque AA iii, choisissez une ou plusieurs bandes νi\nu_iνi (side-chain + bande commune type amide si souhaité).
-
-
Transposition
-
fmol,i=c νif_{\text{mol},i} = c\,\nu_ifmol,i=cνi → réduction par octaves → faud,if_{\text{aud},i}faud,i.
-
Mappez sur 24 tons (ou 12) via les formules ci-dessus.
-
-
Chronologie
-
À chaque formation de liaison peptidique, déclenchez la note de l’AA entrant (enveloppe ADSR courte).
-
Superposez une nappe lente représentant les modes collectifs (moyenne/median des faudf_{\text{aud}}faud de la chaîne courante, plus 1–2 harmoniques).
-
-
Poids/amplitudes
-
Pondérez l’amplitude par l’intensité IR/Raman (si dispo) ou par un proxy (accessibilité au solvant, flexibilité locale, B-factor).
-
-
Repliement
-
À des longueurs critiques (ex. 30–50 aa), ajoutez des accords (combinaisons de 3–4 notes des faudf_{\text{aud}}faud dominants) pour symboliser la naissance des domaines.
-
-
Post-translational
-
Appliquez de légers glissandi/micro-variations si phospho/glycosylation induit un shift attendu des bandes.
-
Pseudocode (ultra-simple) pour vos projets
# Entrées: dico {AA: [nu_cm1_1, nu_cm1_2, ...]}
# Sortie: {AA: {"faud": [...], "idx24": [...]}}for aa, bands in bands_cm1.items():
faud_list = []
idx24_list = []
for nu in bands:
fmol = c * nu
faud = fold_by_octaves(fmol, lo=250, hi=1200)
idx24 = round(24 * log2(faud / 429.62)) % 24
faud_list.append(faud)
idx24_list.append(idx24)
out[aa] = {"faud": faud_list, "idx24": idx24_list}

